8. Mutation, Reparatur und Rekombination
Study these flashcardsFree · spaced repetition · iPhone, Android, Mac & web
All cards
1
Punktmutation
Austausch/ Umwandlung von Basen an einzelnen Positionen der DNA
> Transition und Transversion
> Transition und Transversion
2
Transition
> Punktmutation
> Purinbasen wird durch andere Purinbasen ersetzt
oder
> Pyrimidinbase wird durch andere Pyrimidinbase ersetzt
> Purinbasen wird durch andere Purinbasen ersetzt
oder
> Pyrimidinbase wird durch andere Pyrimidinbase ersetzt
3
Transversion
> Punktmutation
> Purinbase wird durch Pyrimidinbase ersetzt
oder
> Pyrimidinbase wird durch Purinbasen ersetzt
> Purinbase wird durch Pyrimidinbase ersetzt
oder
> Pyrimidinbase wird durch Purinbasen ersetzt
4
Indels
Insertion oder Deletion weniger Basenpaare in der DNA
5
Folgen von Punkt- oder Indelmutationen im NICHT-kodierenden Bereichen.
> Proteinbindestellen können verloren gehen
6
Synonyme Mutation
> Basentausch führt zu keiner Änderung der Proteinsequenz
= Stille Mutation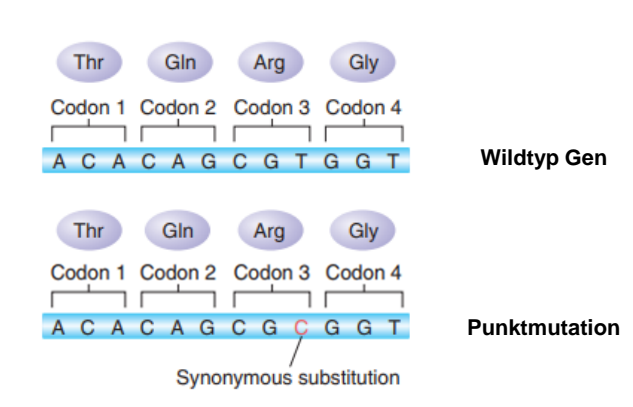
= Stille Mutation
7
Nicht-synonyme Mutation
> Ein Basenaustausch führt zur Änderung der Aminosäuren
=Missense Mutation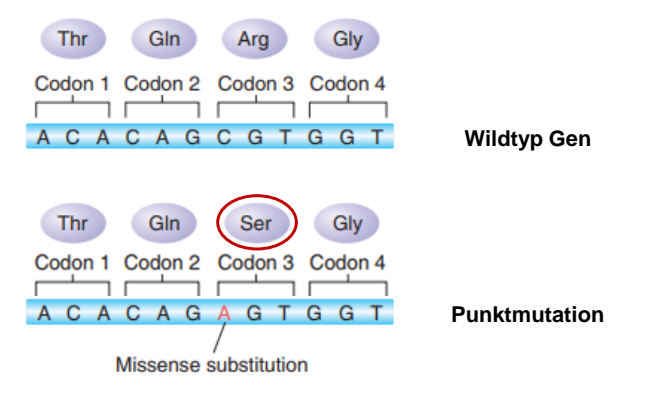
=Missense Mutation
8
Nonsense-Mutation
> Basenaustausch führen zu einem Stopcodon, an der die Translation stoppt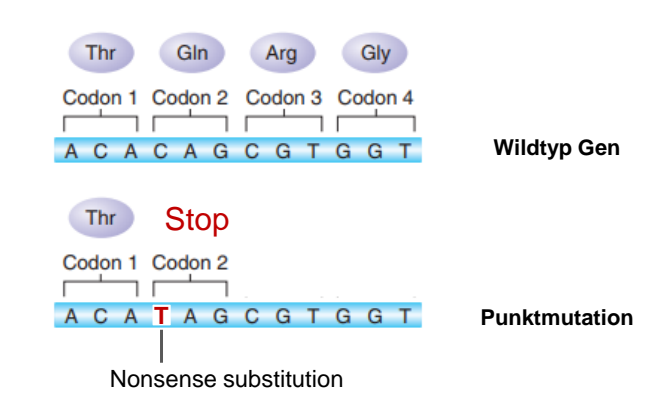
9
Leserahmen Mutation
> Nukleotid-Insertionen oder -Deletionen führen zu einer Verschiebung des Leserahmens und der Bildung einer komplett anderen Aminosäuresequenz 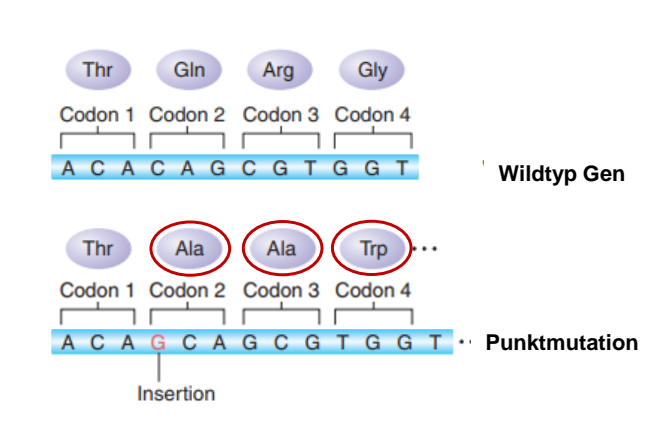
10
Wie erzeugen Mutagene Punktmutationen
> Basen ersetzten (Basenanaloga)
> Basen verändern (Alkylierende Agenzien
> Basen zerstören
> Basen verändern (Alkylierende Agenzien
> Basen zerstören
11
Basenanaloga Wirkung und Beispiel
> werden wie bestimmte Basen eingebaut, paaren aber anders
> 5-Bromo-Uracil (5-BU), 2-Aminopurin (2-AP)
> 5-Bromo-Uracil (5-BU), 2-Aminopurin (2-AP)
12
5-Bromo-Uracil 5-BU
> ist ein Basenanaloga
> wird wie Thymin eingebaut paart aber mit Guanin
> führt zu Transitionen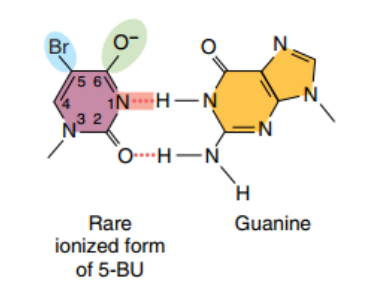
> wird wie Thymin eingebaut paart aber mit Guanin
> führt zu Transitionen
13
2-Aminopurin (2-AP)
> ist ein Basenaloga
> wird eingebaut wie Adenin, paart aber mit Cytosin
> führt zu Transitionen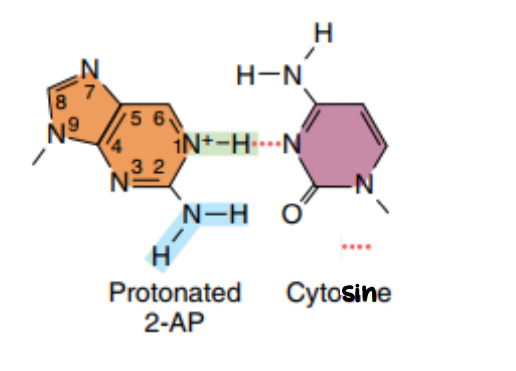
> wird eingebaut wie Adenin, paart aber mit Cytosin
> führt zu Transitionen
14
Alkylierende Agenzien Wirkung und Beispiel
> ändern das Paarungsverhalten von Basen durch Alkylierung
Bsp. EMS (Ethyl-Methan-Sulfonat)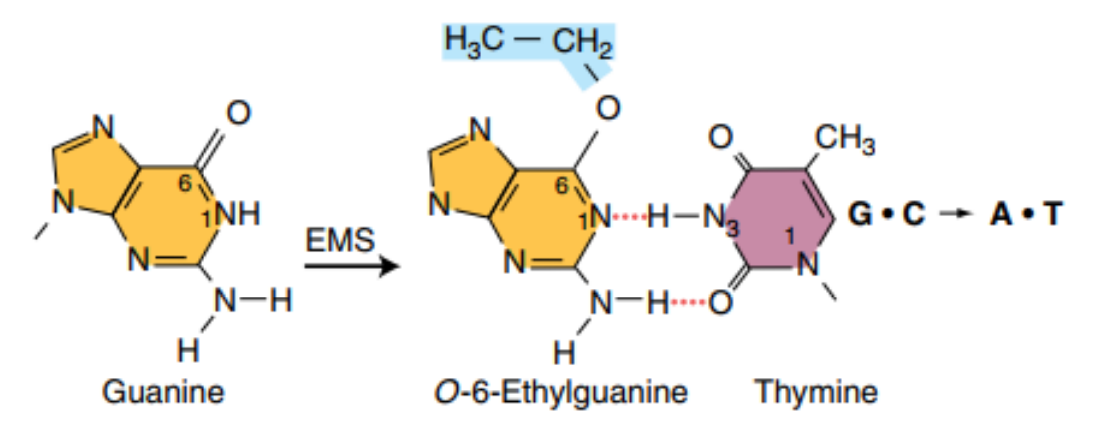
Bsp. EMS (Ethyl-Methan-Sulfonat)
15
Ethyl-Methan-Sulfon EMS
> Alkylierende Agenzien
> Alkyliert Guanin
> O-6-Ethyl-Guanin paart mit Thymin statt Cytosin
> führt zu Transitionen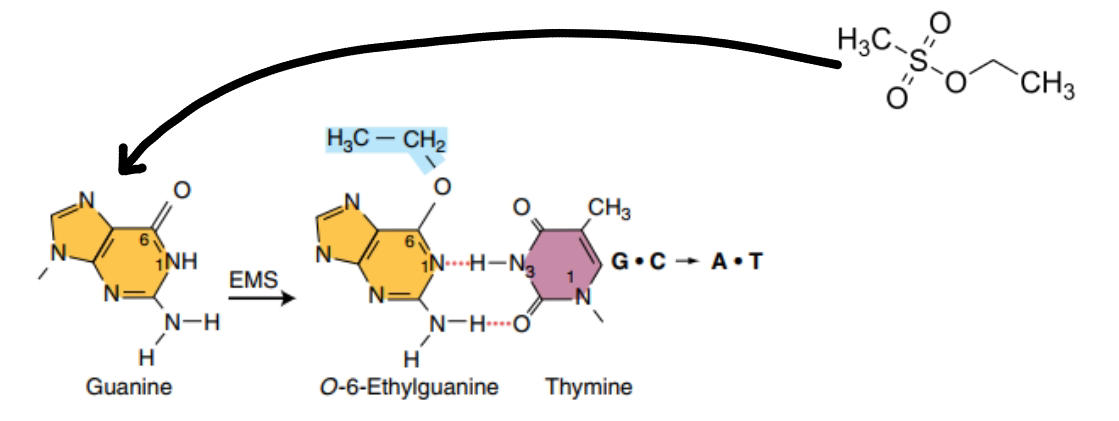
> Alkyliert Guanin
> O-6-Ethyl-Guanin paart mit Thymin statt Cytosin
> führt zu Transitionen
16
Interkalierende Agenzien Wirkung und Beispiel
> Verursachen Insertionen oder Deletionen
> Bsp. Proflavin
> Bsp. Proflavin
17
Proflavin
> schiebt sich zwischen Basenpaare in der DNA
> Dehnung der DNA Doppelhelix
> es entstehen Fehler bei der Replikation
> interkalierend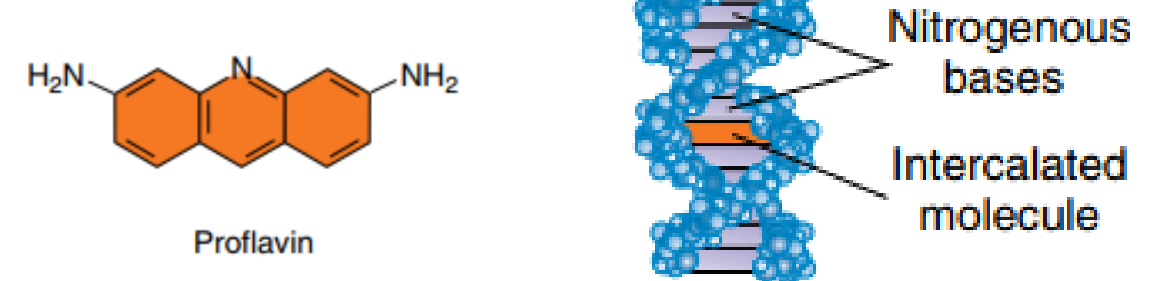
> Dehnung der DNA Doppelhelix
> es entstehen Fehler bei der Replikation
> interkalierend
18
SOS-Reperatur
> durch fehlen von Basen oder falsche Basenähnliche Strukturen bauen fehlertolerante Polymerasen eine zufällige Base ein (25% Wahrscheinlichkeit dass es richtig ist)
> besser irgendeins als gar keins
> Zerstörung z.B. durch UV-Strahlung oder Aflatoxin B1
> besser irgendeins als gar keins
> Zerstörung z.B. durch UV-Strahlung oder Aflatoxin B1
19
Was sind Mutationen
Mutationen sind bleibende Veränderungen in der Nukleotidfolge in der DNA. Sie entstehen während der Replikation, durch Fehlpaarung oder fehlerhaften Einbau.
20
Salvador Luria und Max Delbrück
> Fluktuationstest (1943)
> Experiment mit Phagenresistenten E.coli
> Entstehen Mutationen spontan oder durch Umweltbedingungen
-> Mutationen entstehen spontan
> Experiment mit Phagenresistenten E.coli
> Entstehen Mutationen spontan oder durch Umweltbedingungen
-> Mutationen entstehen spontan
21
Wie entstehen spontane Mutationen?
> Fehler bei der Replikation (Einbau falscher Nukleotide, Indels, große Deletionen oder Verdopplungen)
> durch Depurinierung und Deaminierung von Basen
> Oxidative Schäden an Basen
> durch Depurinierung und Deaminierung von Basen
> Oxidative Schäden an Basen
22
Deaminierung von Basen
durch Deaminierung entstehen anders paarende Basen 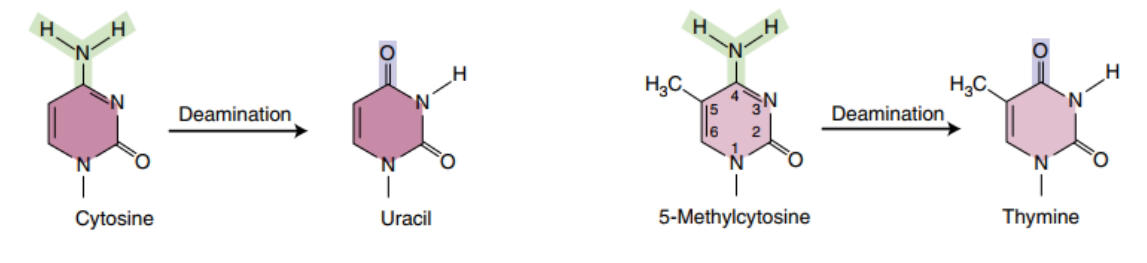
23
Beispiel für Oxidative Schäden an Basen
Guanin wird zu 8-oxo-dG paart mit Adenin statt mit Cytosin
> Transversion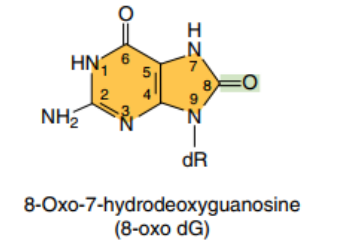
> Transversion
24
Führt jeder Schaden zu einer Mutation?
> Nein, die meisten Fehler werden behoben
25
Fehlerfreie Reperatur
> Chemische Reperatur der Geschädigten Base
oder
> Abbau der Geschädigten DNA und Neu Synthese auf Grundlage eines existierenden Matritzenstranges
oder
> Abbau der Geschädigten DNA und Neu Synthese auf Grundlage eines existierenden Matritzenstranges
26
Photolyase
> direkte Umkehr eines eingebauten Schadens
=> Direkte Reparatur des Schadens, lange vor der Replikation
> Die Photolyase kann UV-induzierte Pyrimidin-Dimere mit Hilfe von sichtbarem Licht auflösen
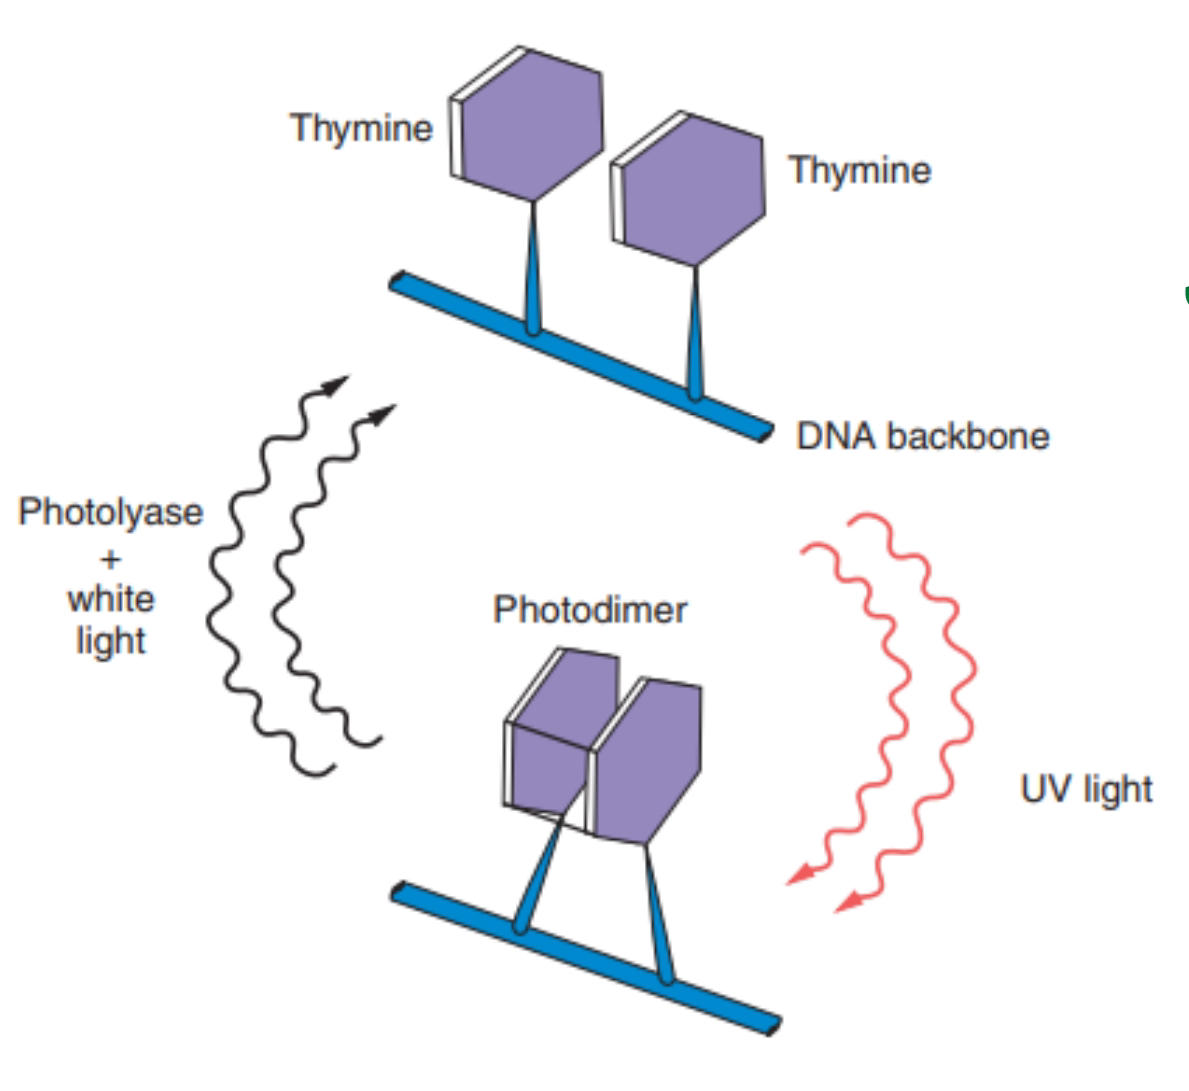
=> Direkte Reparatur des Schadens, lange vor der Replikation
> Die Photolyase kann UV-induzierte Pyrimidin-Dimere mit Hilfe von sichtbarem Licht auflösen
27
Basen- oder Nukleotid-Exzisions-Reperatur BER
> Base oder Nukleotid wird ausgeschnitten und Fehler behoben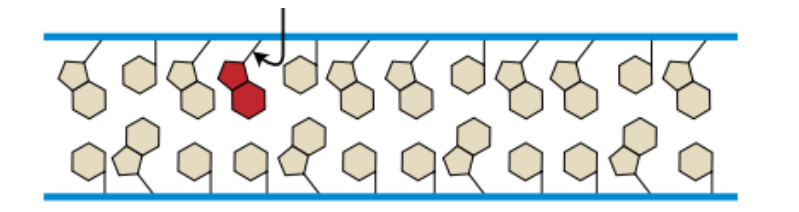
28
Entfernung eines einzelsträngigen DNA-Segmentes und Neusynthese
> Sequenz wird ausgeschnitten und neu synthetisiert 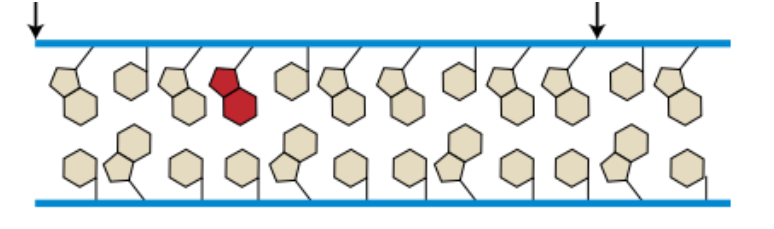
29
Basenexzisionsreparatur (BER) Ablauf
> kann z.B. eine Deaminierung von Cytosin zu Uracil repariert werden
(1) Uracilglycosylase entfernt Uracil aus DNA, es entsteht eine apyrimidinische Stelle
(2) AP Endonuclease schneidet das Zucker-Phosphat heraus
(3) Deoxyribophosphodiesterase entfernt weitere Nukleotide
(4) DNA Polymerase füllt die Lücke mit neuem Strang auf Grundlage des Gegenstranges
(5) DNA Ligase verknüpft das DNA Rückgrat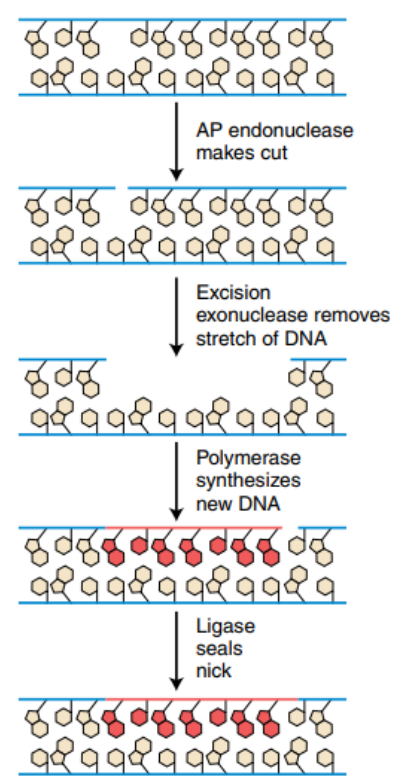
(1) Uracilglycosylase entfernt Uracil aus DNA, es entsteht eine apyrimidinische Stelle
(2) AP Endonuclease schneidet das Zucker-Phosphat heraus
(3) Deoxyribophosphodiesterase entfernt weitere Nukleotide
(4) DNA Polymerase füllt die Lücke mit neuem Strang auf Grundlage des Gegenstranges
(5) DNA Ligase verknüpft das DNA Rückgrat
30
Nukleotidexzisionsreparatur (NER)
> können nicht-passende Basenpaare (z.B. Thymidin-Dimere) identifizieren und ersetzen
(1) uvrABC Exonuklease entfernt ein 12-Nukleotid Fragment um den Fehler herum
(2) DNA Polymerase I füllt die Lücke mit neuem Strang auf Grundlage des Gegenstranges
(3) DNA Ligase verknüpft das DNA Rückgrat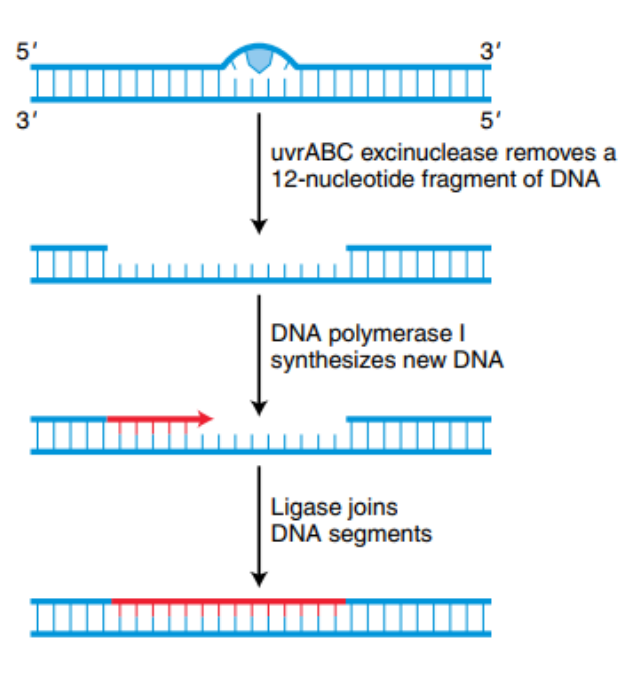
(1) uvrABC Exonuklease entfernt ein 12-Nukleotid Fragment um den Fehler herum
(2) DNA Polymerase I füllt die Lücke mit neuem Strang auf Grundlage des Gegenstranges
(3) DNA Ligase verknüpft das DNA Rückgrat
31
Fehlpaarungs Reperatur / Mismatch repair
> beseitigt Fehler die während der Replikation eingebaut wurden
> nur der Fehler im neusynthetisierten Strang wird repariert
> in E. coli wird dieser Strang durch die noch fehlende Methylierung erkannt.
> In Hefe folgt die Mismatch-Reparatur-Maschinerie direkt der Replikationsgabel
> nur der Fehler im neusynthetisierten Strang wird repariert
> in E. coli wird dieser Strang durch die noch fehlende Methylierung erkannt.
> In Hefe folgt die Mismatch-Reparatur-Maschinerie direkt der Replikationsgabel
32
Wie können Doppelstrangbrüche repariert werden?
> Nichthomologe Endverknüpfung (fehleranfällig)
oder
> Homologe Rekombination (ziemlich genau)
oder
> Homologe Rekombination (ziemlich genau)
33
Nichthomologe Endverknüpfung NHEJ
> fehleranfällig
> wird in sich-nicht-replizierenden Zellen verwendet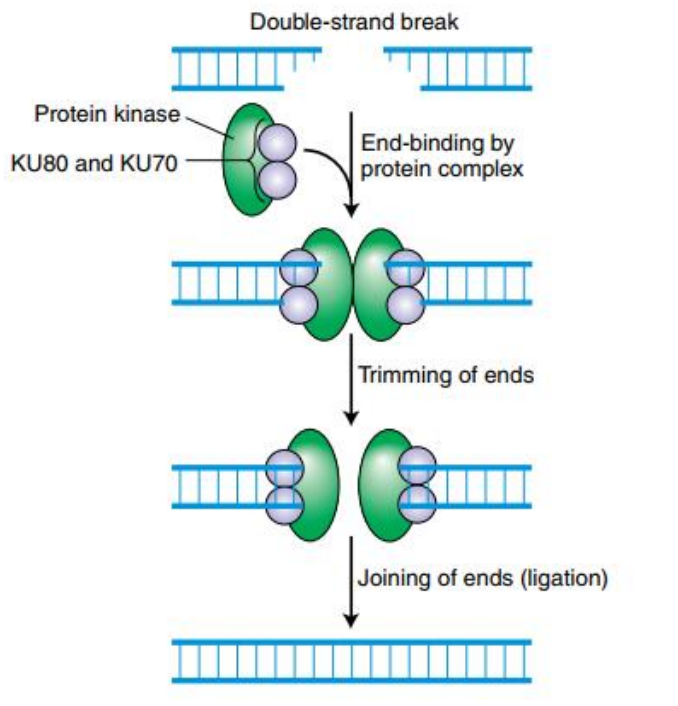
> wird in sich-nicht-replizierenden Zellen verwendet
34
Homologe Rekombination
> Anwesenheit eines homologen Chromosoms wesentlich
> wird in sich teilenden Zellen verwendet
> fehlerfrei
> Rad51 ist ein Rec Homolog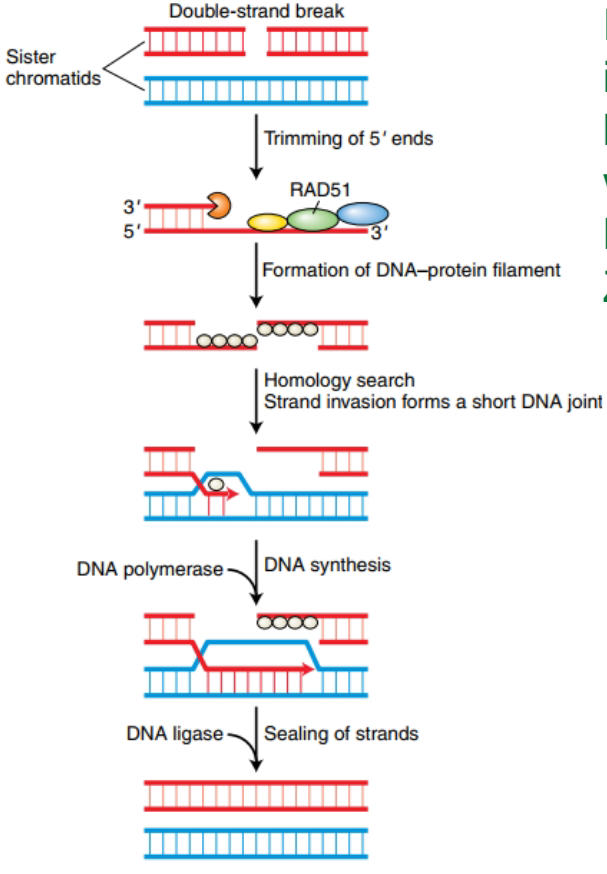
> wird in sich teilenden Zellen verwendet
> fehlerfrei
> Rad51 ist ein Rec Homolog
35
Homologe Rekombination bei der Meiose (Crossover)
> Während des Crossovers wird die DNA in beiden homologen Chromatiden an der gleichen Stelle gebrochen
> die Stränge werden getauscht und wieder verknüpft, ohne dass Information verloren geht oder dazukommt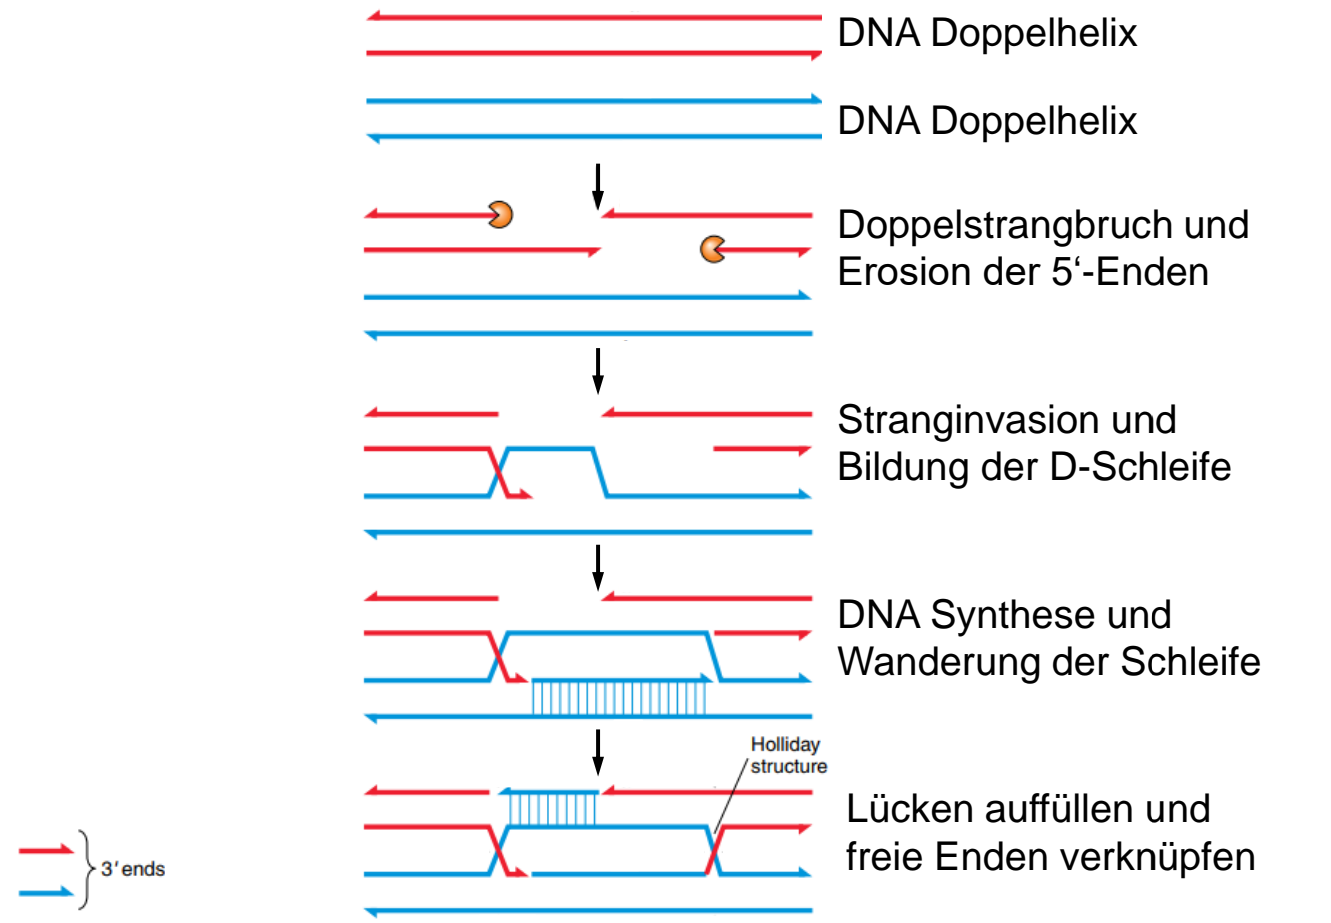
> die Stränge werden getauscht und wieder verknüpft, ohne dass Information verloren geht oder dazukommt
36
Welche der Fehlermechanismen führt meistens zu Transitionen?
- Die Zugabe von EMS
- Das Basenanaloga 5-BU
- Die Anwesenheit von Proflavin
- Das Oxidationsprodukt 8-oxo-dG
- Die spontane Deaminierung von Cytosin
37
Welche der Mechanismen gehört zu den fehlerfreien Reparaturmechanismen?
- Nicht-Homologe Endverknüpfung (NHEJ)
- SOS-Reparatur
- Basenexzisionsreparatur
- Fehlpaarungsreparatur
- Homologe Rekombination